


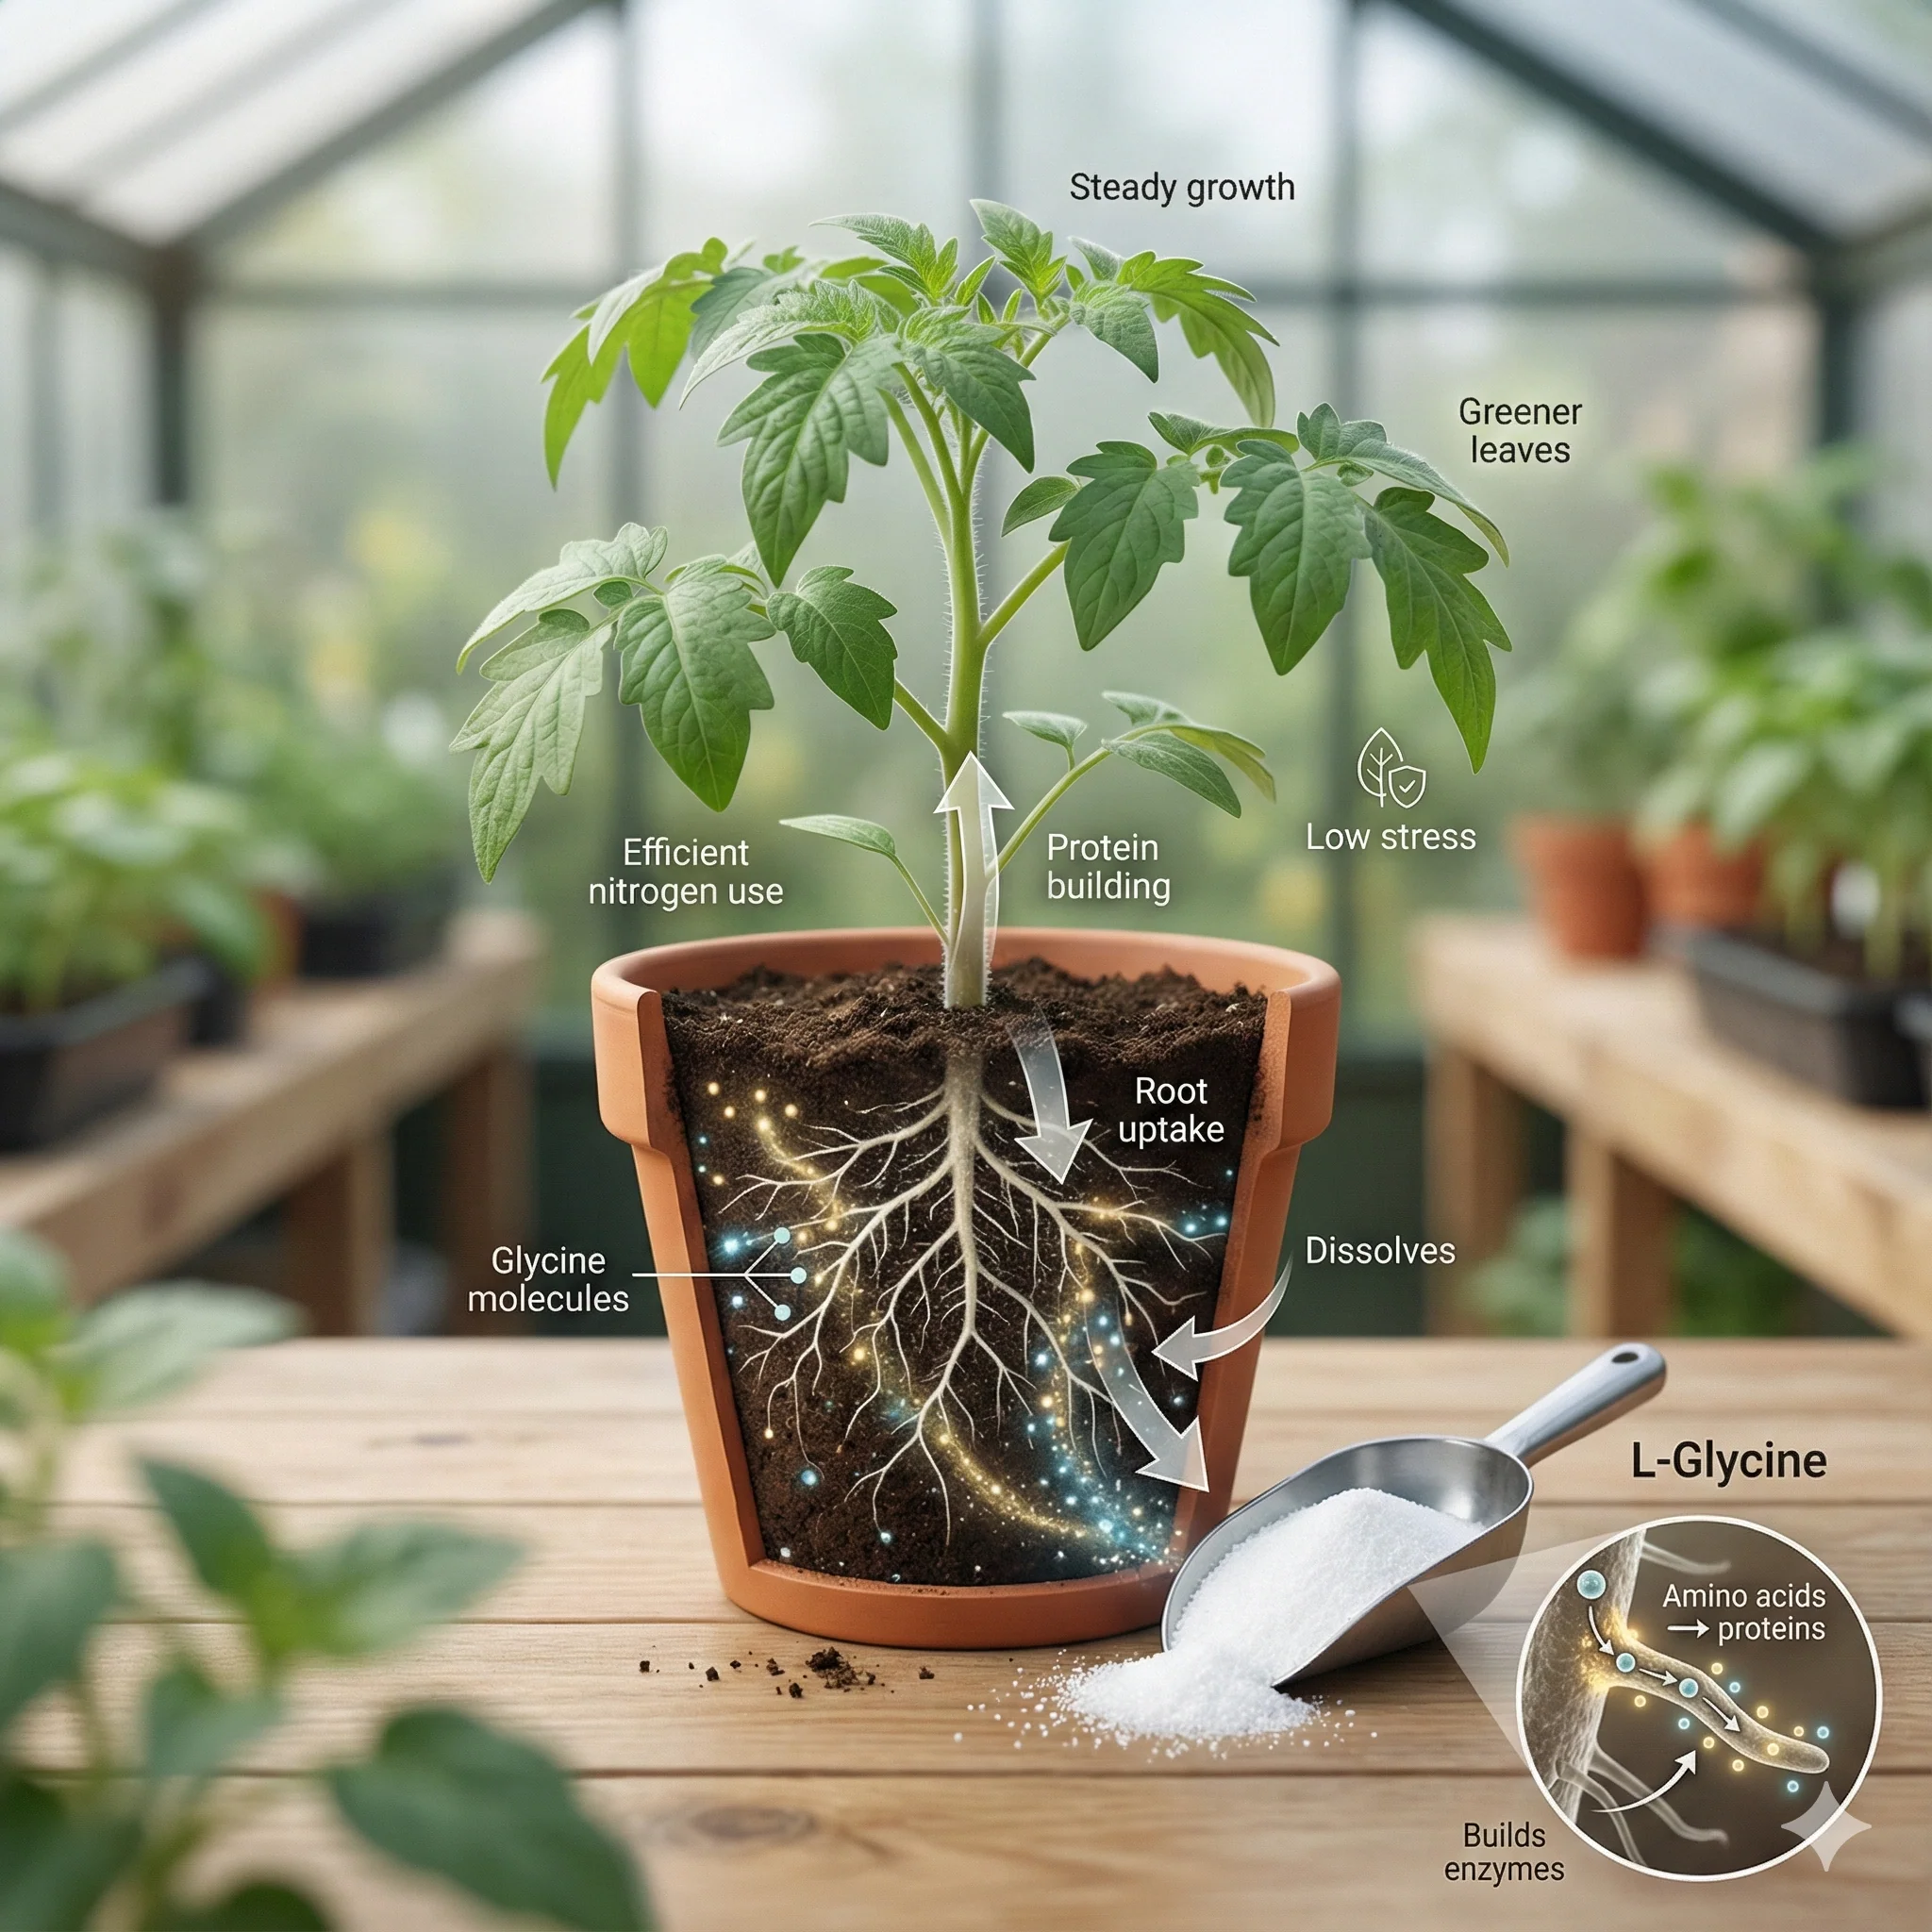

مقدمه اى بر اسيدهاى آمينه
اسيدهاى آمينه از مهمترين متابوليت هاى اوليه و گاهاً ثانويه گياه بوده كه نقش مهمى در حيات و زندگى سلول و به طور كلى موجودات زنده دارند. با توجه به اينكه بسيارى از ويژگيهاى فيزيكى و شيميايى سلول، بافت و اندام در موجودات زنده وابسته به اسيدهاى آمينه است لذا حيات، بدون اسيدهاى آمينه ممكن نمى باشد.
هر اسيدآمينه از يک كربن نامتقارن به نام كربن آلفا تشكيل يافته است كه با چهار گروه مختلف كربوكسيل (COOH)، هيدروژن، گروه آمينه بازى و يک زنجيره جانبی پيوند مى شود. از منظرى ديگر، هر اسيدآمينه از يک اسيد آلى به وجود مى آيد كه در آن هيدروژنى كه در وضعيت آلفا قرار دارد با یک گروه آمينی (NH2-) جايگزين شده است. به عنوان مثال با اين وضع اسيد استيک، گليسين و اسيد پروپيونيک آلانين را مى سازند. از آنجا كه در هر اسيدآمينه حداقل يک گروه كربوكسيل اسيدى (COOH-) و یک گروه آمينه بازى (NH2-) سبب مى شود كه آنها در محيط اسيدى رفتار بازى و در محيط بازى رفتار اسيدى از خود نشان دهند. بطور كلى هر اسيدآمينه آلفا داراى يک گروه آمين (NH2-) ويک گروه كربوكسيل (COOH-) بر روى كربن آلفا مى باشد.
دامنه اى از اسيدهاى آمينه ساختارى و غير ساختارى در گياهان يافت مى شود كه وظايف و كاركردهاى مهمى در حيات سلول و موجود زنده دارند. انواع غير ساختارى به صورت آزاد در سلول وجود دارند و ممکن است از تجزیه پروتئین ها یا در نتیجه جذب از آوند آبکش و فضای بین سلولی حاصل شده باشند.
پروتئينها خود از واحدهاى متوالى اسيدآمينه تشكيل شده اند. به طور مشابهى پروتئين هاى موجود در گياه مى توانند نقش ساختارى و يا تنظيمى داشته باشند و از اين نظر يک
فاكتور كليدى در پتانسيل توليد محصولات محسوب مى شوند. اين پروتئين ها به اشكال مختلف و با كاركردهاى متفاوت در سيكل زندگى و حيات گياه بسيار حياتى هستند. پروتئين ها حاوى مقادير بى شمارى اسيدهاى آمينه مى باشند كه حدود ٢٠ نوع از آنها براى انسان ضرورى محسوب می شوند.
تمام اسيدهاى آمينه موجود در رشته هاى پروتئينی، بجز گليسين، داراى يک كربن فعال نورى هستند كه عوامل آمينی و اسيدى به آن متصل مى گردند. در گياهان مهمترين نقش اسيدهاى آمينه شركت در پروسه پروتئين سازى به عنوان يكى از مهمترين اجزاى سخت افزارى و نرم افزارى درون گياهان است. علاوه بر اين اسيدهاى آمينه مى توانند به عنوان منبع انرژی، بخصوص جهت توليد گلوكز در فعاليت هاى حياتى بكار روند. جدا از اين، برخى اسيدهاى آمينه به عنوان پيش ماده براى بعضی مواد و تركيبات زيستی گياهى، از قبيل آنزيمها، فايتوسيدروفورها، اتيلن، جيبرلين و غيره مطرح مى باشند.
در گياه وقتی ذخيره اسيدهاى آمينه كم باشد آنها بطور ترجيحى براى ساخت پروتئين هاى ساختارى و كاركردى گياه مصرف مى شوند. مقادير بيشتر اسيدهاى آمينه باعث مى شود مقدارى از آنها در فرايند انرژی زايى و اكسيداسيون بكار رود. اين ممكن است با افزايش دفع همزمان اسيدهاى آمينه از گياه همراه باشد. استفاده از هورمون هاى رشد گياهى مى تواند بازده استفاده از اسيدهاى آمينه را در گياه افزايش دهد.
اسيدهاى آمينه اى كه به عنوان اسيدهاى آمينه غير ضرورى شناخته شده اند به ميزان زيادى از طريق انتقال عامل آمين بر روى تركيبات واسطه اى حاصل از گليكوليز و جرخه كربس ساخته مى شوند. در اين بين تأمين مقادير كافى گروه آمين براى ساختن آنها ضرورى است. لذا تغذيه آمينی گياه نيز مى تواند در بهبود شرايط رشدونمو و توليد گياه نقش داشته و موثر باشد.
اهمیت اسیدهای آمینه
اسیدهای آمینه واحد سازنده مهمترین متابولیتهای گیاه یعنی پروتئین ها می باشند. پروتئین ها نقشهاى حياتى و بى شمارى در حيات سلول و گياه دارند. آنزيمها كه از مهمترين اجزاى فعال سلولى هستند ساختارى پروتئينی دارند كه واكنشهاى شيميايى را كاتاليز مى كنند و بدون آنها، يا در كمبود، يا غير فعال شدن آنها، واكنش هاى مربوطه زيادى متوقف مى شوند. اسيدهاى آمينه تركيبات نسبتاً ناهمگن و متنوعى می باشند. تنوع از اين نظر كه هر كدام يک زنجيره جانبی متفاوتى دارند كه بيانگر ويژگى هاى منحصر به فرد فيزيكى، شيميايى و بيولوژيكى هر اسيدهاى آمينه مى باشد.
پروتئينها پلى مرهایى از اسيدهاى آمينه نوع آلفا هستند، گرچه تنها در مورد فنيل آلانين هر دو فرم L و D آن در ساختمان پروتئينها يافت مى شود. تمام انواع پروتئينها بطور اوليه و اساسی از تنها ٢٠ نوع اسيدآمينه سنتز مى گردند. اين اسيدهاى آمينه معمولى، آنهايى هستند كه براى آنها حداقل یک كودون خاص در كد ژنتيكى DNA وجود دارد. حدود ٢٠ اسيد آمينه وجود دارد كه كودون DNA آنها شناخته شده است. نسخه بردارى و ترجمه كد DNA منجر به پليمريزه شدن اسيدهاى آمينه به يک توالى خطى خاص پروتئينی مى گردد. جدا از اسيد آمينه هاى معمول، پروتئين ها ممكن است حاوى اسيدهاى آمينه مشتق شده نيز باشند كه معمولاً بوسيله يک واكنش آنزيمى بر روى يک اسيد آمينه معمول، بعد از تركيب شدن آن اسيد آمينه به درون يک ساختار پروتئينی، تشكيل مى گردد. از اسيد آمينه هاى اشتقاقى مى توان سيستين، دسموزين و ايزودسموزين موجود در الاستين، هيدروكسی پرولين و هيدروكسی ليزين موجود در كلاژن و گاما كربوكسی گلوتامات موجود در پروترومبين را نام برد.
علاوه بر نقش اسيدهاى آمينه در ساختمان پروتئينها و آنزيمها، آنها كاركردهاى بسيار متنوع و مفيد ديگرى نيز دارند كه از آن جمله مى توان به سميت زدايى مواد سمى و مضر در گياهان و جانوران، به عنوان انتقال دهنده ييامهاى عصبی در جانوران، به عنوان شبهه هورمون در گياهان، ايجاد محيط مناسب براى اپتيمم عمل عناصر غذايى و ويتامينها، به عنوان مكمل غذايى براى انسان، دام و گياه، در ساخت كودهاى آمينوكلات عناصر غذايى كاربرد دارند.
همچنين اسيدهاى آمينه در انسان نقش مهمى در كاهش چربى، سلامت پوست، كنترل ريزش مو، كاهش بيمارى ديابت، كنترل كلسترول خون و به عنوان عامل ضد پيرى دارند.
برخى اسيدهاى آمينه غير ساختارى در سيستم دفاعى گياهان عليه آفات و بيماريها و يا عليه گياه خوارى ممكن است كاربرد داشته باشند. مثلاً كاناوانين كه يک آنالوگ آرژنين است در بسيارى از لگومها، مخصوصاً به مقادير زيادى در كياه Canavalia gladiate يافت مى شود. اين اسيد آمينه باعث حفاظت گياهان از شكارگران مانند حشرات مى گردد و مصرف خام آنها براى انسان مضر است. همچنين اسید آمینه غیرپروتئینی میموزین نیز در گونه های دیگر لگومها مخصوصا Leucaena Leucocephala یافت می شود. این ترکیب یک آنالوگ تیروزین است و می تواند باعث سمیت در جانورانی شود که از آن تغذیه می کنند.
نقش تغذيه اى اسيدهاى آمينه
طى چند سال اخير استفاده از اسيدهاى آمينه در تغذيه گياهى توسعه روزافزونى يافته است. اين شايد تا حدود زيادى به فهم و درک نقش اسيدهاى آمينه در فيزيولوژى و متابوليسم گياه طى چند دهه قبل بر می گردد. استفاده از اسيدهاى آمينه در علم تغذيه گياهى خود پيشرفتی نوين محسوب مى گردد كه تا حدود زيادى مرهون توسعه توليد صنعتی انواع مختلف اسيدآمينه مى باشد. استفاده از كودهايى بر مبناى اسيدهاى آمينه مى تواند در كوتاه و مخصوصاً در بلند مدت منجر به كاهش آلودگی هاى زيست محيطى نيز گردد. بيشترين شكل كاربردى اسيدهاى آمينه در حال حاضر در قالب سنتز و توليد آمينوكلاتها مى باشد. استفاده از آمينوكلاتها شايد در آينده پيشرفت بيشترى داشته و «تغذيه بر اساس اسيدهاى آمينه» محور اصلى تغذيه گياهى قرار بگيرد. به هر حال على رغم وجود فعال و تنوع زياد آنها در بازار، تاكنون مطالعات اندكى در مورد نقش اسيدهاى آمينه و حتی آمينوكلاتها در تغذيه گياه و رفع كمبود عناصر غذايى در گياه صورت گرفته است. در مورد آمينوكلاتها ميزان و نسبت اين مطالعات به سرعت توليد، تنوع و بازار كودهاى آمينوكلاتى بسيار كندتر مى باشد. به هر حال طى سالهاى ٢٠١٣ و ٢٠١٢ مقالات چندى در مورد اثرات كاربرد آمينوكلاتها و پاسخ برخى گياهان به آنها وجود دارد.
در اين زمينه نياز است كه تحقيقات علمى و كاربردى متنوعى در راستاى كاربرد اسيدهاى آمينه و آمينوكلاتها حداقل در گياهان زراعى مهم صورت گيرد. يكى از مواردى كه باعث پیچیدگی تغذيه اسيدهاى آمينه درگياهان مى گردد سرنوشتی است كه ممكن است براى اسيدآمينه جذب شده در گياه بوجود آيد. در تغذيه اسيدآمينه اى گياهان، اسيدآمينه ممكن است يكى از سرنوشت هاى زير را داشته باشد:
– اسیدآمينه وارد فرآيندهاى متابوليكى گياه شده و گياه از آن براى سنتز پروتئين ها استفاده نمايد.
– اسيدآمينه در سيستم انتقال گياه به طور فعالى وارد مى شود.
– اسيدآمينه ممكن است درون گياه دچار اكسيداسيون شود و غير فعال گردد.
– اسيدآمينه ممكن است به طرق مختلف از گياه دفع شود.
ازنظر ميزان دفع نيتروژن به شكل اسيدهاى آمينه نمى توان براى گياهان مقدار مشخصی را بيان نمود. اين به عواملى مانند وضعيت تغذيه اى گياه مخصوصاً از نظر نيتروژن و يا اسيدهاى آمينه، وضعيت متابولیکی گیاه، تنشهای محیطی، مرحله رشد و نمو و ژنوتیپ گیاه بستگی دارد.
موثر بودن كاربرد اسيدهاى آمينه بستگى به فاكتورهاى مختلفى دارد. در مورد برخی اسيدهای آمينه تمام ايزومرهاى آنها مانند نوع L مى توانند موثر باشند. حداقل اين امر در جانوران نشان داده شده است. براى درک بهتر اثرات ايزومرهاى مختلف اسيدآمينه اى خاص، بايستی جذب و اثرات فيزيولوژيكى آن ايزومر در گياهان نيز مورد بررسی قرار گيرد. مطالعات در اين زمينه واقعاً بسيار محدود مى باشد. مثلا در پرورش طيور مصرف ايزومر D لوسين معادل ايزومر L آن در تغذيه جوجه هاى گوشتی موثر است. اين در مورد اسيدآمينه والين به حدود نصف كاهش مى يابد و مصرف ايزومر D ايزولوسين در تغذيه جوجه هاى گوشتی در مقايسه بانوع L، اثرات جزئى و يا فاقد ارزش تغذيه اى می باشد. به هر حال براى وضوح اثرات چنين ايزومرهايى در گياهان و تفاوت اثرات آنها نياز به تحقيقات بيشتر در اين زمينه مى باشد.
در جانداران و در گياهان ايزومر D-اسيدهاى آمينه توسط آنزيم D-آمينواسيداكسيداز و يا ترانس آمينازها به تركيبات كتونى اسيد مربوطه تبديل مى گردند. در اثر انتقال عامل آمين بر روى اين تركيبات كتونى، ايزومر L-اسيدآمينه مربوطه توليد مى گردد. در انسان اين مورد براى برخى اسيدهاى آمينه صدق نمى كند مثلاً ليزين و ترئونين در طى انتقال آمين در بدن توليد نمى شوند، لذا ايزومر D آنها فاقد ارزش تغذيه اى است.
گاهى اوقات تركيبات كتونى اسيدهاى آمينه در بدن به سرعت اكسيده شده و تبديل به تركيبات ديگرى مى گردد لذا با انتقال عامل آمين، اسيدآمينه اى توليد نمى گردد. اين موضوع يعنی رقابت بين اكسيده شدن تركيبات كتونى با عمل انتقال عامل آمين بر روى آنها ممكن است يكى از دلايل عمده عدم تبديل ايزومر D تعدادى اسيدهاى آمينه به ايزومر L آنها باشد. در جانوران و انسان عدم تبديل ايزومر D اسيدهاى آمينه به ايزومر L موجب افزايش دفع نيتروژن توسط جانوران و افزايش آلودگى هاى محيطى مى گردد.
استفاده از اسيدهاى آمينه نشاندار مى تواند تا حدود زيادى از نحوه جذب و انتقال آنها در گياه و سرنوشت آنها در درون گیاه اطلاعاتی به ما بدهد. در این راستا پروتئین های مختلف ممکن است نیمه عمرى در حدود دقيقه، هفته و ماه داشته باشند. در اين بين پروتئين هايى با نيمه عمر نسبتاً كم در تخمين ميزان يپوتئين درونى گياه مى توانند باعث عدم دقت برآورد گردند، چرا كه برگشت مجدد اسيدهاى آمينه در آن مهم است و معمولاً رخ مى دهد.
از طرف ديگر در فيزيولوژى گياهى و علوم پرورش گياهان، انتقال بلاواسطه و با حداكثر عملكردى اسيدهاى آمينه حاصل از تجزيه پروتئينها در گياه مورد نظر است. از اين نظر سلول مى تواند از طريق استفاده مجدد بخش قابل توجهى از اسيدهاى آمينه آزاد شده از تجزيه پروتئين، از خروج و دفع اسيدهاى آمينه ضرورى جلوگيرى كند و اتلاف آنها را در مسيرهاى كاتابوليكى به حداقل برساند. از طرف ديگر استفاده مجدد و موثر اسيدهاى آمينه مى تواند منجر به كاهش احتياجات انرژى مربوط به حمل آنها به داخل سلول گردد. اين خود به نوبه باعث كاهش اكسيداسيون اسيدهاى آمينه نيز مى گردد.
غالباً انتقال هر ماده اى به داخل غشاهاى سلولى به متصل شدن آنزيمى كه آن ماده را به پروتئين انتقال مى دهد بستگی دارد. غشاى سلولى نقش مهمى در انتقال اينگونه مواد دارد. از اين نظر امكان استفاده مستقيم از اسيدهاى آمينه هاى پروتئين براى پروتئين سازى مجدد، بدون وارد شدن آنها به مجموعه اسيدهاى آمينه موجود در سلول وجود دارد.
در گياهان با جذب اسيدهاى آمينه، آنها ممكن است به شبكه پیچیده اى از واكنشهاى متابوليكى وارد شوند. از طرف ديگر مقادير مازاد اسيدآمينه مى تواند در گياهان ذخيره شده و البته مقادير قابل ملاحظه اى از آن نيز مى تواند از گیاه دفع گردد. در مقادير بالاى اسيدآمينه ها، هنوز سميت گياهى گزارش نشده است، و اين تا حدودى مربوط به تحقيقات كم در اين زمينه مى باشد به هر حال مقادير زياد اسيدهاى آمينه آزاد غيرپروتئينی در علوفه احشام مى تواند در مسير سوخت و ساز بدن مسموميت ايجاد نموده و براى دامها مسموم كننده باشد.
رابطه آنتاكونيستی بين اسيدهاى آمينه حداقل براى برخى از آنها (مخصوصاً آنهايى كه ساختار مشابه دارند) در جانوران و انسان مانند اثرات بين ليزين و آرژنين، و يا بين اسيدهاى آمينه منشعب وجود دارد. چنين رابطه اى نيز ممكن است در گياهان وجود داشته باشد. مثلاً در طيور اگر حداكثر رشد مد نظر است بايستی گليسين و پرولين غير ضرورى هم به ١٠ اسيدآمينه ضرورى ديگر آنها اضافه شود. طيور در حال رشد مانند ديگر حيوانات اهلى توانايى ساخت حلقه آروماتيک فنيل آلانين و تيروزين را ندارند. با وجود اين به علت توانايى همه حيوانات براى ساخت تيروزين از فنيل آلانين، فقط فنيل آلانين به عنوان اسيدآمينه ضرورى شناخته مى شود. اگرچه تيروزين نمى تواند به فنيل آلانين تبديل شود ولى وجود آن در جيره نياز به فنيل آلانين را كاهش مى دهد. گليسين از سرين ساخته مى شود. همچنين در بدن جانوران گليسين و سرين به همديگر قابل تبديل هستند، گرچه گليسين در جیره موثرتر است.
معمولاً تريپتوفان كافى منجر به ساخت نيكوتين آميد كافى مى گردد. در برخى جانوران مازاد ليزين استفاده از آرژنين، و مازاد لوسين استفاده از ايزولوسين و والين را حتی هنگامى كه در جانور محدود كننده نباشند مختل مى كند. همه اين موارد منجر به كاهش رشد مى گردند. وقتی نياز به آرژنين بيشتر باشد اثرات زيادى ليزين بر رشد منفى تر و تحمل كمتر مى گردد. آرژنين نيز ممكن است چنين اثرى بر ليزين داشته باشد يعنی يک رابطه آنتاگونيستی دو طرفه وجود دارد.
طيف وسیعى از اسيدهاى آمينه که به طور طبیعی و آزاد در گياهان يافت مى شوند داراى توانایی ايجاد اثرات مضر در حيوانات هستند. اينها در گونه هاى بقولات و براسيكاسه بيشتر است كه از نظر اقتصادى نيز گياهانى مهم هستند و استفاده از آنها را به عنوان غذاى حيوانات محدود مى سازد.
در برخى گونه هاى گياهى در توليد اسيدهاى آمينه گوگرد دار، گاها” سلنيم جايگزين گوگرد می شود كه در اينجا سلنيم مى تواند در علوفه توليد مسموميت نمايد. در حيواناتى كه با علوفه براسیكا تغذيه مى شوند ظرف سه هفته كم خونى هموليتيک شديدى ايجاد مى شود كه همراه با كاهش اشتها و شير مى باشد. تغذيه اين گياهان روى كبد هم اثرات سوئى مى گذارد، و اين عمدتاً به سبب آنالوگ اسيدآمينه اس متيل سيستئين سولفوكسيد SMCO است. در انسان مصرف زياد دانه بقولات باعث ايجاد بيمارى نرولاتيريسم مى شوند يعنی سميت سيستم عصبی به سبب اسيدهاى آمينه نرولايتروزنيک كه احتمالاً انسان برخلاف نشخوار كنندگان نمى تواند اين اسيدآمينه در بقولات را تجزيه كند. اينها اسيدآمينه هاى غير پروتئينی نروتوكسيک هستند مانند بتا-اگزاليل آنيوآلانين و آلفا-كَاما-اسيد دى آمينو بوتريک. SMCO در سيستم هاضمه جانوران توليد دى متيل دى سولفيد مى كند كه اين با بلوكه كردن گروههاى سولفيدريل پروتئينها آنها را غير فعال مى كند. واكنش با گلوتاتيون احيا شده نيز يكى ديگر از مكانيسمهاى مسموميت SMCO است.
به هر حال بيشتر مطالعات انجام گرفته در زمينه نقش تغذيه ای اسيدهاى آمينه در انسان و جانوران مى باشد. از آنجا كه در طبيعت سيستم هاى بيولوژيكى شباهت هاى زيادى با هم دارند لذا چنين رفتارها و شباهت هايى براى اسيدهاى آمينه در درون بافتها و سلول هاى گياهان دور از انتظار نيست. در گياهان در حال رشد يپسخ به يک اسيدآمينه احتمالاً تحت تأثير عوامل مختلفى مانند تنش ايمونولوژيكى، درجه حرارت محيط، جنس، گونه، سن، و عوامل محيطى ديگر و از جمله تغذيه قرار مى گيرد.
بطور كلى اين عوامل را مى توان به دو دسته تقسيم بندى نمود:
١- عواملى كه بر جذب عناصر و اسيدهاى آمينه موثرند.
٢- عواملى كه بر بازدهى استفاده از اسيدهاى آمينه تأثيرگذار هستند.
تمايز بين اين دو عوامل تعين كننده اين است كه آيا پاسخهاى گیاهى مربوط به مصرف اسيدآمينه است يا خير. با افزايش سن گياه به نظر مى رسد احتياجات اسيدآمينه اى آن حداقل براى نقشهاى ساختارى کاهش یابد.
از نظر اقتصادى نيز با توجه به اعمال اضافه قيمت اسيدهاى آمينه در قيمت كودهاى توليدى به عنوان آمينوكلات باز هنوز اين مواد تغذيه اى حاوى صرفه اقتصادى است. يعنی تأثير اقتصادى اسيدهاى آمينه بسيار بيشتر است زيرا وجود آنها معمولاً رشد و توليد گياه را بهبود مى بخشند. قابليت بقاى اسيدآمينه هاى جذب شده، در درون گياه به شكل فعال بسيار مهم است و در حقيقت بسيارى از مزاياى ذكر شده براى آمينو كلاتها و اسيدهاى آمينه به اين ويرگی بستگى دارد.
لذا از اين نظر، دو فاكتور قابليت بقاى اسيدآمينه و قابليت اسيميلاسيون اسيدآمينه درون گیاه بسیار مهم هستند. برای سنجش قابلیت اسیمیلاسیون اسیدهای آمینه اطلاعات کافی در ارتباط با چهار عامل زير ضرورى است:
– ميزان اسيدآمينه مصرف شده،
– ميزان اسيدآمينه آزاد،
– ميزان افزايش پروتئين،
– ميزان اسيدآمينه دفع شده.
غنی سازى محصولات
از نظر غنی سازى، دو جنبه تنوع بيشتر و غلظت بيشتر هر دو اسيدهاى آمينه و عناصر غذايى در قسمت قابل مصرف محصولات مورد نظر است. در اين راستا به دو شكل مى توان اقدام به كاربرد اسيدهاى آمينه (همراه يا بدون عناصر غذايى) نمود. يک مورد آن در حين رشد و نمو گياه و درطى فصل رشد از طريق تغذيه برگى و يا ريشه گياهان مى باشد و روش ديگر از طريق اضافه كردن آنها به محصولات پس از برداشت و يا در حین فرآورى آنها مى باشد.
شرايط اقليمى كشور ما و انواع تنشهاى موجود در فرآيند توليد محصولات كشاورزى باعث مى شوند كه بسيارى از محصولات زراعى و باغى توليد شده از غلظت كافى عناصر غذايى خصوصاً ريز مغذيها برخوردار نباشند. مقدار كمتر از حد اين عناصر مشكلاتى را براى رشد و نمو گياه و همچنين توليد كمى و كيفى گياه ايجاد مى كند. چنين محصولات توليدى نيز از عناصر ريز مغذى در كمبود بوده و لذا كل زنجيره غذايى را با چنين مشكلى مواجه مى كند براى اين منظور محلول پاشی كودهاى حاوى اين عناصر مى تواند مفيد باشد. آمينوكلاتها مزيتی دو چندان براى اين منظور دارند چرا كه هم عنصر غذايى را به شكل موثرى در اختيار گياه قرار داده و غلظت زيستی آن را در بافتهاى گياهى افزايش مى دهند و هم بنيان اسيدآمينه اى موجود در اين كودها نيز نقش تغذيه اى و تنظيمى داشته و مى تواند مورد استفاده گياه قرار گرفته و در رشد و توليد گياهى بكار برده شود.
بعضی از گياهان يا قسمتهايى از آنها از نظر برخى اسيدهاى آمينه ممكن است در نقصان باشند. مثلاً دانه غلات برخى اسيدهاى آمينه ضرورى را به حد كافى ندارند و اين خود باعث كاهش قابليت هضم پذيرى غلات و جذب آنها در روده باريک براى انسان مى گردد. از طرف ديگر غلات مهمترين منبع تغذيه اى در كشورهاى جهان سوم و مخصوصاً كشور ما مى باشد. لذا براى چنين مواردى و محصولاتى مى توان كودهاى آمينوكلات خاص آنها را توليد كرد كه نه تنها عناصر غذايى و تغذيه آنها به نحو احسن صورت پذيرد، بلكه آن محصول از نظر اسيدهاى آمينه خاص و يا عنصرى خاص غنی سازى گردد.
.منبع: کتاب کلات ها و آمینو کلات ها و نقش تغذیه ای آنها در گیاهان/ نویسنده : دکتر محمد کاظم سوری
تهیه و تنظیم: سارا قنبرپور
(مدیر بخش تولید محصولات گلخانه ای)


